|
|
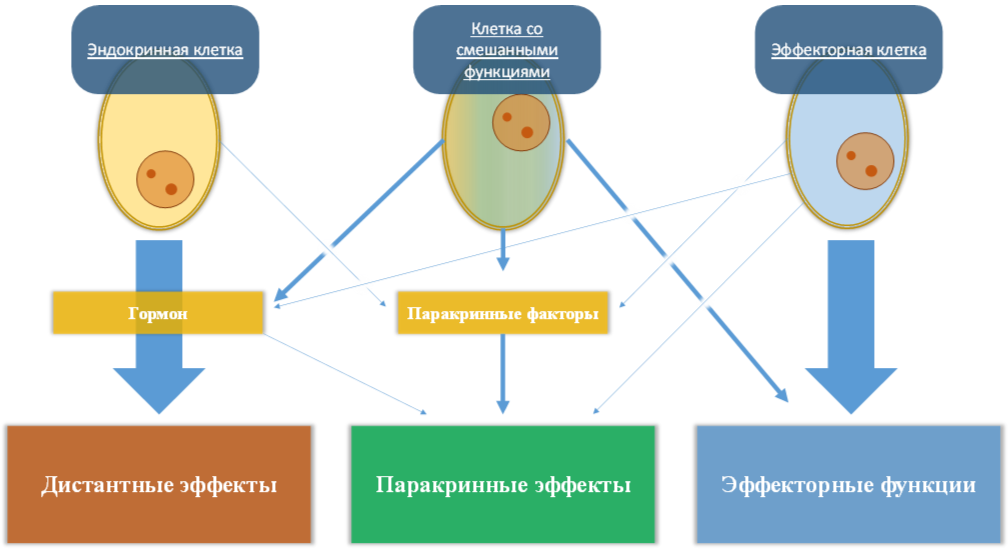
Гормоны могут секретировать клетки разного уровня специализации (рис. 5):
Рисунок 5. Степень специализации гормонпродуцирующих клеток Эндокринные железы, как правило, выделяют сразу несколько типов гормонов (см. Приложение 1). И важно отметить, что гормоны той же структуры, что продуцируются эндокринными железами, могут синтезироваться местно, в эффекторных клетках и тканях (см. Приложение 2). Эндокринная клеткаВысоко специализирована на продукции гормонов, способна секретировать ряд паракринных факторов (напр., клетки эндокринных желез) Клетка со смешанными функциямиВ дополнение к продукции гормонов и паракринных факторов имеет дополнительные эффекторные функции (напр., клетки Сертоли продуцируют эстрогены, активин, ингибин и другие гормоны, одновременно поддерживая развитие сперматозоидов). Эффекторная клеткаСпециализирована на выполнении отдельной физиологической функции, но способна секретировать гормоны и паракринные факторы (напр., адипоциты специализированы на липидном обмене, секретируют гормоны лептин, адипонектин, резистин и другие системные регуляторы жирового обмена и пищевого поведения). Эндокринные клетки могут группироваться различным образом:
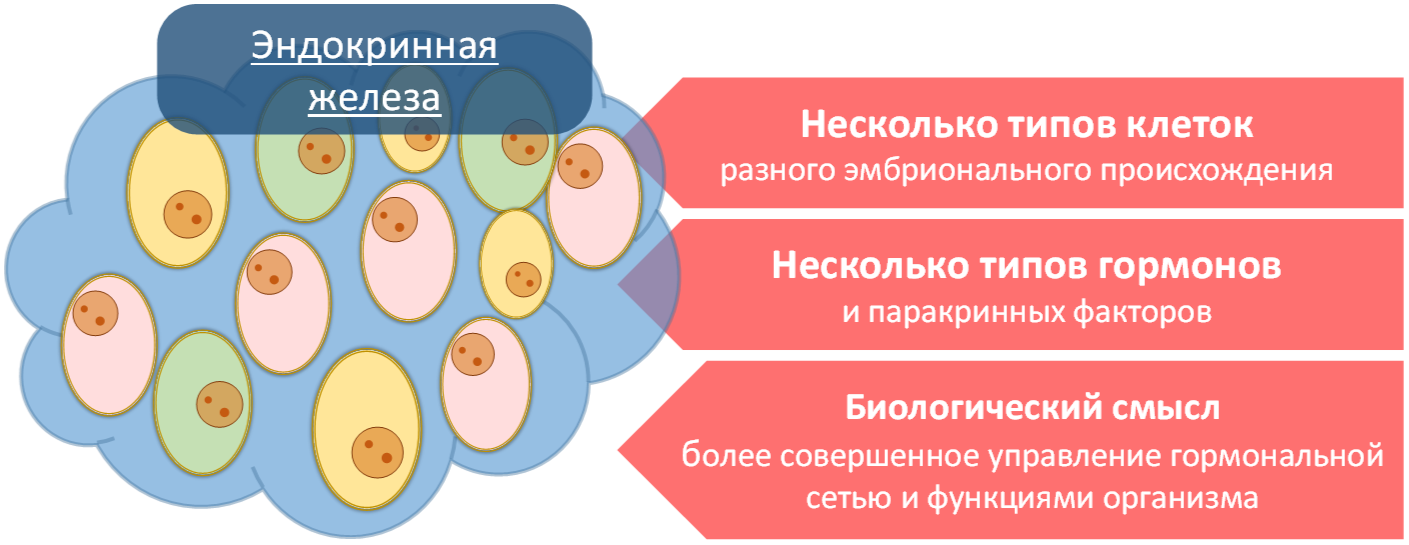
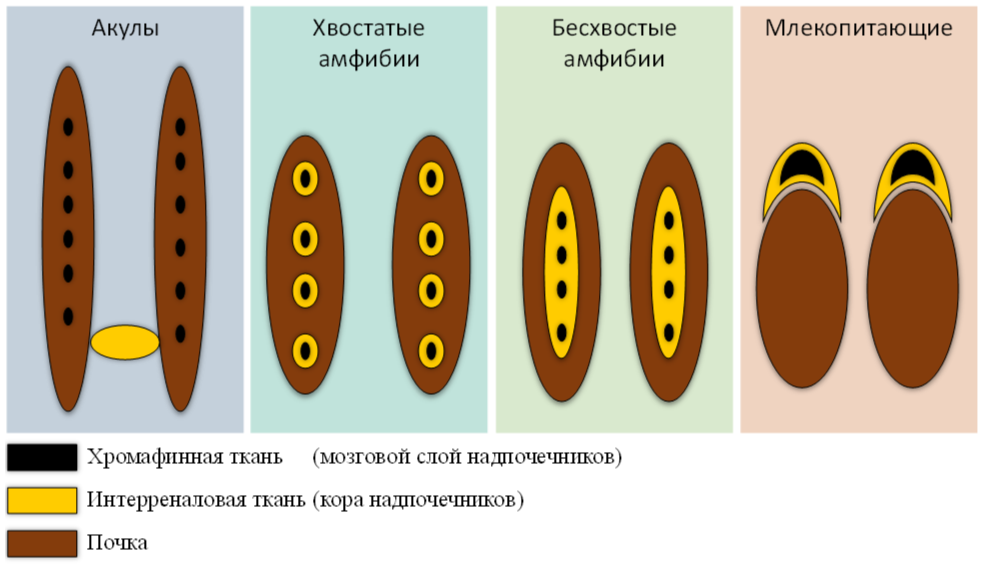
Эндокринные железыЭндокринные железы (рис. 6) содержат клеточные элементы разного эмбрионального происхождения, однако у низших позвоночных эндокринные клетки разных типов не всегда объединяются в единый орган (рис. 7, рис. 8). Соединение нескольких эндокринных клеток в железу облегчает паракринный обмен информацией. Биологический смысл подобной интеграции эндокринных клеток – увеличение контроля за потоками информации и эффекторными функциями (рис. 6). Рисунок 6. Эндокринная железа Эндокринные железы – эволюционное приобретение. Например, у акуловых интерреналовая ткань (гомолог коры надпочечников) в соответствии со своим названием располагается между почками, а хромафинная ткань (гомолог мозгового слоя) разбросана в виде узлов вдоль почек. В ходе эволюции у хвостатых амфибий объединились интерреналовая и хромафинная ткани. Впоследствии это объединение расширилось и привело к оформлению отдельных надпочечниковых желез высших позвоночных.
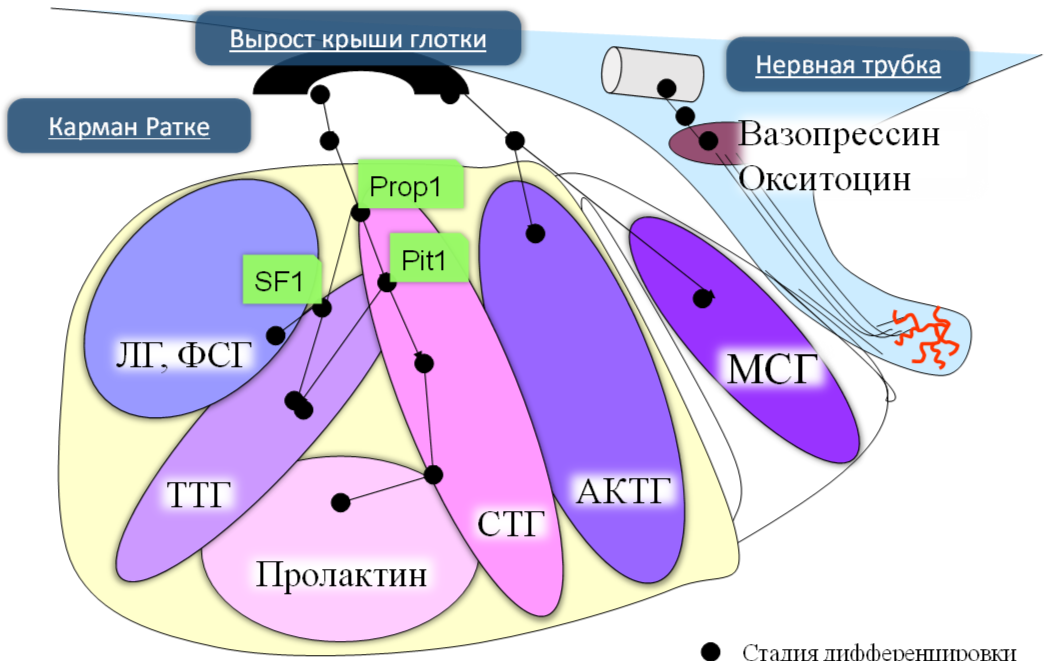
Рисунок 7. Эволюция надпочечников позвоночных Передняя и задняя доли гипофиза развиваются из разных эмбриональных зачатков – эктодермы глотки (кармана Ратке) и нейроэктодермы нервной трубки, соответственно. Соматорофы, лактотрофы, тиреотрофы и гонадотрофы передней доли гипофиза развиваются из дорзо-вентральной части кармана Ратке, а кортикотрофы передней доли и клетки средней доли гипофиза – из его дистальной части, тесно контактирующей и срастающейся с нейрогипофизом. Последовательное действие транскрипционных факторов prop-1 и pit-1 индуцирует развитие соматотрофов и лактотрофов переднего гипофиза, а также влияет на дифференцировку тиреотрофов. В дифференцировке гонадотрофов участвуют факторы транскрипции prop-1 и SF-1.
Расшифровку сокращений гормонов см. в Приложении 1.
Рисунок 8. Эмбриогенез гипофиза млекопитающих и топография гормонпродуцирующих клеток Функции гормоновФункции гормонов можно условно разделить на две принципиально разных группы:
Сигнальная роль гормонов осуществляется внутри соответствующей вертикальной/горизонтальной оси или между осями. В Приложении 4 представлены основные, но далеко не все, эффекторные и сигнальные функции наиболее изученных гормонов. Эффекторные функцииЭти функции связаны с действием гормонов на ткани-мишени, непосредственно участвующие в регуляции обмена веществ и поддержании физиологических процессов. Эффекторные функции гормонов могут быть необратимыми (в раннем онтогенезе – часто морфогенными) и обратимыми регуляторными. Примером подобных функций служит морфогенное и регуляторное действие андрогенов на развитие и функционирование простаты и других мужских половых органов; обратимая стимуляция глюкокортикоидами глюконеогенеза в печени и др. Сигнальные функцииФункции заключаются в поддержании/регуляции гормоном активности как своей гормональной оси, так и гормональной сети в целом. Подобные информационно-координирующие свойства гормонов также задействованы в координации других сигнальных систем: нервной и иммунной. Так, андрогены помимо указанных выше эффекторных функций входят в состав репродуктивной гормональной оси и регулируют ее активность. Они тормозят секрецию гонадотропинов гипофиза, гонадолиберина гипоталамуса и по механизму отрицательной обратной связи контролируют свой уровень в кровотоке. Но андрогены также влияют на продукцию гормонов других осей (напр., атриопептидов сердца, включаясь в регуляцию водно-солевого обмена) и дифференцировку мозга по мужскому типу, адаптируя активность ЦНС к потребностям мужских особей. Обычно сила регуляторного воздействия максимальна на собственную ось, и слабее – на другие оси. Соотношение эффекторных и информационных функций у разных групп гормонов может существенно различаться. У гормонов гипоталамо-гипофизарной системы чаще более выражены информационные функции, у гормонов периферических желез и клеток с эндокринной секрецией информационные и эффекторные функции сопоставимы.
Системы межклеточного управления | Описание курса | Структурно-функциональная организация эндокринной системы |