|
|
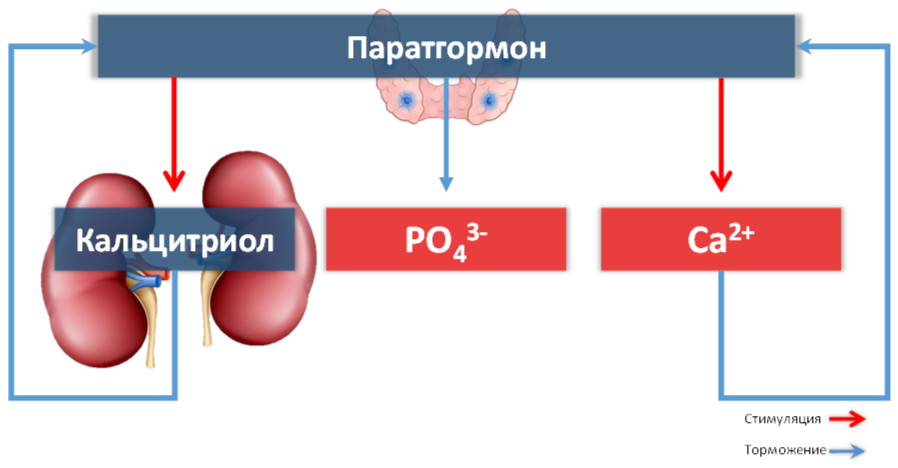
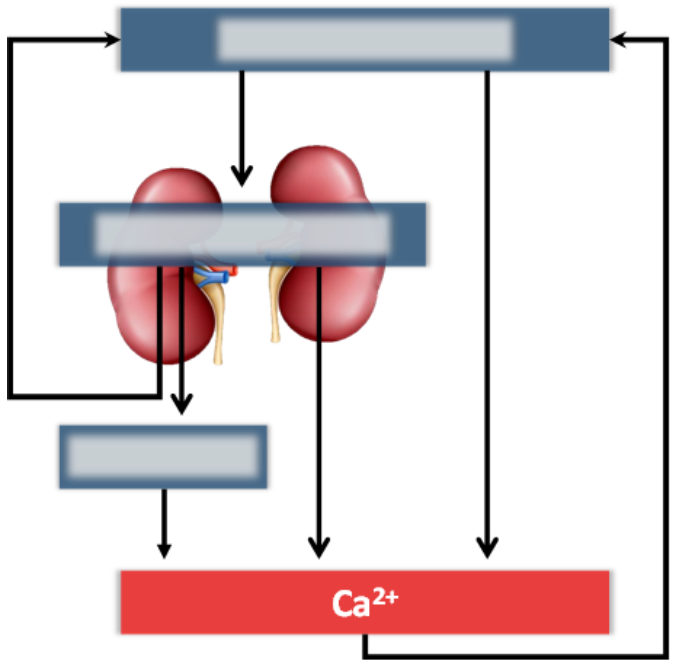
Фосфатные соли Ca2+ (главным образом гидроксиапатиты (Ca10(PO4)6(OH)2)) составляют основной минеральный компонент костной ткани. Ca2+ необходим для сокращения мышечных волокон, внутриклеточного траффика и экзоцитоза везикул (включая синаптические пузырьки). Этот ион является внутриклеточным посредником многих сигнальных соединений, участвует в процессах деления и апоптоза. Концентрация Ca2+ в крови поддерживается на постоянном уровне с высокой точностью за счет действия ряда гормонов, наиболее значимыми из которых являются паратгормон, кальцитонин и гормональная форма витамина D (кальцитриол). ПаратгормонПаратгормон (паратиреоидный гормон, ПТГ) – полипептид клеток паращитовидных желез, увеличивающий концентрацию Ca2+ и уменьшающий концентрацию фосфатов в крови. Регуляция продукцииМежду ПТГ, ионами Ca2+ и гормональной формой витамина D существуют реципрокные регуляторные связи (рис. 68): увеличение секреции паратгормона повышает содержание Ca2+ в крови и ускоряет синтез кальцитриола в почке; по механизму отрицательной обратной связи повышенные концентрации Ca2+ (через сенсоры Ca2+, представляющие собой рецепторы, сопряженные с G-белками) и кальцитриола угнетают продукцию паратгормона. Это происходит в результате угнетения экспрессии гена ПТГ и/или торможения его секреции клетками паращитовидных желез. Рост концентрации паратгормона приводит также к снижению концентрации фосфатов в крови. Секреция паратгормона снижается после приема пищи с высоким содержанием Ca2+.
Рисунок 68. Прямые и обратные связи в регуляции продукции паратгормона РецепторыРецепторы паратгормона – белки надсемейства рецепторов, сопряженных с G-белками. Передача сигнала осуществляется преимущественно по аденилатциклазному пути за счет увеличения продукции цАМФ. Классические органы-мишени – остеобласты и клетки проксимальных канальцев нефрона, где экспрессируются рецепторы паратиреоидного гормона. ФункцииКостная тканьГиперкальциемический эффект паратгормона достигается за счет:
Это способствует резорбции кости и поступлению Ca2+ и фосфатов из костной ткани в кровь. Паратгормон также индуцирует рецепторы кальцитриола в костной ткани. Кишечник
Паратгормон опосредованно усиливает всасывание Ca2+ в кишечнике за счет стимуляции ПочкиПаратиреоидный гормон, действуя в восходящем колене петли Генле нефрона, стимулирует реабсорбцию Ca2+ и угнетает реабсорбцию фосфатов, увеличивая их выведение с мочой. В проксимальных канальцах нефрона он индуцирует экспрессию 1α-гидроксилазы, ключевого фермента биосинтеза кальцитриола, и уменьшает количество мРНК 24-гидроксилазы, катализирующей образование малоактивного метаболита витамина D. Суммарный эффект паратгормона на кости и почки сводится к увеличению концентрации Ca2+ и снижению концентрации фосфата во внеклеточной жидкости. Разница их концентраций обеспечивает дополнительную диссоциацию фосфатных солей Ca2+ в костях. В почках паратгормон также ингибирует реабсорбцию бикарбонатов, натрия и жидкости.
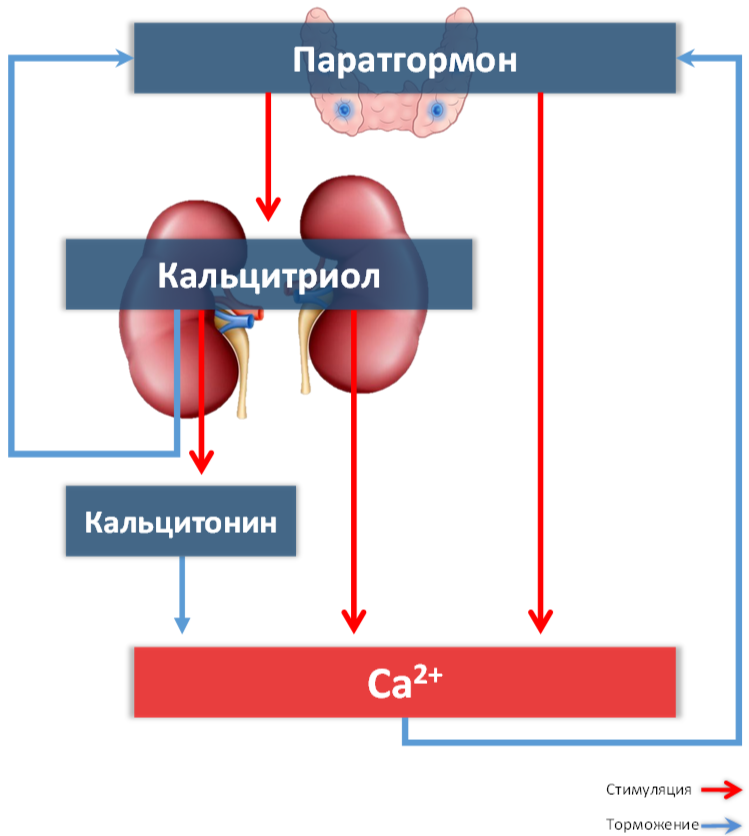
Гормональная форма витамина D (кальцитриол)Гормональная форма витамина D (1α,25-дигидроксивитамин D, кальцитриол) синтезируется последовательным гидроксилированием холекальциферола (витамина D): сначала в печени по 25-му положению с образованием малоактивного 25-гидроксивитамина D, затем в почке по 1α-положению с образованием 1α,25-дигидроксивитамина D. Регуляция продукцииРегуляция образования кальцитриола осуществляется преимущественно на уровне 1α-гидроксилазы проксимальных почечных канальцев. Биосинтез этого фермента стимулируется паратгормоном и/или пониженным содержанием фосфата крови. Активный гормон не только ингибирует свою продукцию по механизму отрицательной обратной связи (подавляя продукцию ПТГ и экспрессию 1α-гидроксилазы), но и усиливает собственную деградацию, стимулируя транскрипцию 24-гидроксилазы. Витамин D и его гидроксилированные метаболиты, включая кальцитриол, транспортируются в комплексе с транспортным белком крови, связывающим витамин D (транскальциферином). Причем образовавшийся в печени 25-гидроксивитамин D обладает наивысшим сродством к этому белку. В отличие от большинства гормонсвязывающих белков, витамин D-связывающий белок не регулирует биодоступность, а направленно транспортирует 25-гидроксивитамин D из первичной мочи в проксимальные трубочки для 1α-гидроксилирования и активации. РецепторыРецептор кальцитриола относится к надсемейству ядерных рецепторов и экспрессируется в классических органах-мишенях кальцитриола (кишечник, кости, почки, паращитовидные железы) и многих других. ФункцииКальцитриол способствует поддержанию постоянной концентрации внеклеточного Ca2+, действуя на кишечник, кости, почки и паращитовидные железы. КишечникКальцитриол - основной стимулятор всасывания Ca2+ и фосфатов в тонком кишечнике. Регуляция всасывания под действием кальцитриола может затрагивать различные механизмы (облегчённую диффузию, везикулярный транспорт) в зависимости от отдела кишечника. Костная тканьКальцитриол стимулирует накопление Ca2+ в остеоцитах и остеобластах, участвует в развитии и минерализации костной ткани, ремоделировании костей (совместно с паратгормоном, потенциируя действие последнего). ПочкиКальцитриол стимулирует реабсорбцию Ca2+ в дистальных почечных канальцах, снижая его экскрецию с мочой. Это происходит за счет увеличения экспрессии генов системы трансцеллюлярного транспорта Ca2+. Снижение выведения ионов Ca2+ почками приводит к повышению их концентрации в крови. Паращитовидная железаКальцитриол подавляет транскрипцию гена паратгормона. Действуя на другие ткани, кальцитриол стимулирует секрецию кальцитонина С-клетками щитовидной железы и адреналина мозговым слоем надпочечников. КальцитонинКальцитонин – гипокальциемический и гипофосфатемический гормон, синтезируемый С-клетками щитовидной железы. Регуляция продукцииПродукцию кальцитонина стимулируют гастрин, Ca2+, глюкагон и GLP (глюкагоноподобный пептид), секреция которых растет в ответ на прием пищи. Наибольшим эффектом обладает гастрин. Предполагают, что увеличение секреции кальцитонина в ответ на эти гормоны является защитой от пищевой гиперкальциемии. В этом проявляется его основная функция, поскольку удаление щитовидных желёз практически не меняет содержание Ca2+ и фосфата в крови. Повышение концентраций Ca2+ и кальцитриола в крови также стимулирует секрецию кальцитонина. РецепторыРецепторы кальцитонина – белки надсемейства рецепторов, сопряженных с Gs-белками. Cигнал передаётся по аденилатциклазному пути за счет увеличения продукции цАМФ. ФункцииВ норме вклад кальцитонина в регуляцию уровня Ca2+ в крови относительно невелик и заключается в защите от пищевой гиперкальциемии, однако при аномалиях работы паращитовидной железы эффекты кальцитонина отчётливо видны. Это позволяет считать кальцитонин антагонистом паратгормона. Костная тканьКальцитоин тормозит дифференцировку предшественников-остеокластов, ослабляет резорбцию костей и высвобождение из них Ca2+ и фосфатов. КишечникКальцитонин снижает трансцеллюлярный транспорт Ca2+ в кишечнике. ПочкиВ почках кальцитонин подавляет реабсорбцию и Ca2+, и фосфата. Однако этот эффект выражен только при сверхфизиологических концентрациях гормона. Как и паратгормон, в почках кальцитонин усиливает экспрессию 1α-гидроксилазы, ключевого фермента синтеза кальцитриола. Кроме вышеописанных гормонов, в регуляции гомеостаза Ca2+ участвуют глюкокортикоиды, тормозящие ремоделинг костей (подавляют дифференцировку остеобластов, всасывание Ca2+ кишечником и его реабсорбцию почками), эстрогены, увеличивающие прочность костей (стимулируют продукцию кальцитонина, работу остеобластов) и некоторые другие.(андрогены, пролактин, факторы роста, инсулин, ИФР, IL-1). Взаимосязи гормонов, регулирующих отмен кальция представлены нарис. 69.
Рисунок 69. Гормоны, влияющие на концентрацию Са2+ и связи между ними
Клинические комментарии
Частой причиной развития остеомаляции у женщин в постменопазе является дефицит эстрогенов. Эти и другие проявления менопаузы хорошо поддаются коррекции с помощью гормональной заместительной терапии. Для этого используют препараты с вариабельным содержанием эстрогенов и прогестинов, имитирующие естественные колебания этих гормонов во время менструального цикла.
Рекомендованная литература
1. Briot K, Roux C.//Glucocorticoid-induced osteoporosis. -RMD Open. -2015-V. 1(1):e000014.
2. Cheloha RW, Gellman SH, Vilardaga JP, Gardella TJ//PTH receptor-1 signalling-mechanistic insights and therapeutic prospects. -Nat Rev Endocrinol. 2015-V.11(12):712-24. 3. Hendy GN, Canaff L Calcium-sensing receptor, proinflammatory cytokines and calcium homeostasis Semin Cell Dev Biol. 2015- S1084-9521(15)30006-9. 4. Jeon US// Kidney and calcium homeostasis. -Electrolyte Blood Press. -2008 -V.6(2):68-76. 5. Nagano N //Pharmacological and clinical properties of calcimimetics: calcium receptor activators that afford an innovative approach to controlling hyperparathyroidism.- Pharmacol Ther. 2006 -V.109(3):339-65. 6. Naot D, Cornish J. //The role of peptides and receptors of the calcitonin family in the regulation of bone metabolism. -Bone. 2008-V.43( 5):813-8. 7. Taylor CW, Tovey SC. //From parathyroid hormone to cytosolic Ca2+ signals. -Biochem Soc Trans. 2012 -V.40(1):147-52.
Задания для самопроверки
1. Восстановите схему действия паратгормона, вписав названия сигнальных соединений и типы связей (стимулирующие/тормозные).
 2. Какие эффекты паратгормон оказывает на:
3. В каких органах происходит активирующее гидроксилирование витамина D?
4. Пациентка 57 лет жалуется на боли в костях и частые переломы костей. За последние 3 года наблюдалась по поводу переломов лучевой и малоберцовой костей, полученных в быту.
Гормональные регуляторы водно-солевого обмена | Описание курса | Приложения |